
Menganalisis Hubungan Kekerabatan Filogenetik
Menelusuri Akar, Bukan Ujung Cabang
Kekerabatan filogenetik ditentukan secara eksklusif oleh titik percabangan (node), bukan urutan vertikal atau kedekatan fisik antar ujung cabang. Dalam membaca diagram evolusi, letak taksa yang tersusun di sisi kanan sering kali memunculkan ilusi visual. Padahal, cabang-cabang pada setiap titik percabangan dapat diputar $180^\circ$ secara bebas tanpa mengubah relasi filogenetik sedikit pun. Dua spesies yang digambarkan berdampingan dari atas ke bawah bisa saja memiliki jarak evolusi yang amat jauh apabila garis silsilah keduanya baru bertemu di pangkal pohon yang purba.
Satu-satunya metode valid untuk menetapkan kedekatan kekerabatan adalah dengan menelusuri mundur garis keturunan masing-masing spesies ke masa lampau hingga bertemu pada titik percabangan bersama paling mutakhir, yang dikenal sebagai MRCA (Most Recent Common Ancestor). Sebagai contoh pada pohon primata, orang utan (Pongo) diletakkan berdekatan secara susunan vertikal dengan kera Dunia Baru (Platyrrhini). Namun, penelusuran garis menunjukkan bahwa Pongo bertemu dengan Gorilla pada node sekitar 14 Mya (Million years ago), sedangkan pertemuannya dengan Platyrrhini harus ditarik mundur melewati masa divergensi kera Dunia Lama dan Baru (>30 Mya). Oleh sebab itu, anggapan bahwa Pongo berkerabat lebih dekat dengan Platyrrhini dibandingkan dengan Gorilla (seperti pada Opsi A) merupakan kekeliruan akibat membaca posisi ujung garis, bukan titik percabangannya.
Pada sebuah pohon filogenetik sederhana yang memuat tiga spesies K, L, dan M, spesies K dan L digambarkan berdampingan secara vertikal di ujung atas. Namun, penelusuran garis silsilah menunjukkan bahwa garis spesies K bertemu lebih dulu di sebuah percabangan bersama dengan spesies M sebelum akhirnya menyatu dengan garis spesies L di percabangan yang lebih purba. Berdasarkan prinsip filogeni, manakah pernyataan hubungan kekerabatan yang paling akurat?
- Spesies K dan L, karena kedua spesies tersebut digambarkan berdampingan secara berurutan pada ujung diagram pohon.
- Spesies K dan M, karena kedua spesies tersebut bertemu pada titik percabangan (MRCA) bersama yang paling mutakhir.
- Spesies L dan M, karena kedua spesies tersebut menempati posisi cabang paling luar dari struktur kladogram.
- Spesies K, L, dan M memiliki tingkat kekerabatan yang setara karena semuanya berada pada era waktu yang sama.
Jawaban: Spesies K dan M, karena kedua spesies tersebut bertemu pada titik percabangan (MRCA) bersama yang paling mutakhir.
Kekerabatan evolusioner ditentukan oleh kebaruan titik nenek moyang bersama (MRCA). Walaupun spesies K dan L disusun bersebelahan secara visual pada ujung diagram, garis K dan M bertemu pada titik percabangan yang lebih baru. Posisi vertikal ujung cabang dapat diputar bebas tanpa mengubah hubungan kekerabatan, sehingga K dan M berkerabat paling dekat.
Kekerabatan evolusi dievaluasi dengan menelusuri titik percabangan (MRCA) pertama saat menelusuri garis dari spesies masa kini ke belakang.
Membaca Waktu Divergensi (Sumbu X)
Waktu divergensi spesifik pada sumbu geologis menunjukkan secara pasti kapan pemisahan taksa terjadi, menentukan pasangan kerabat paling erat. Sumbu horizontal di bagian bawah pohon filogenetik mengukur rentang waktu dalam satuan Mya (Million years ago). Arah pembacaan skala ini bergerak dari kiri (era purba puluhan juta tahun silam) menuju ke kanan (angka 0 yang merepresentasikan masa kini). Semakin kecil angka Mya suatu titik percabangan, semakin baru pemisahan garis keturunan tersebut terjadi dalam skala waktu evolusi.
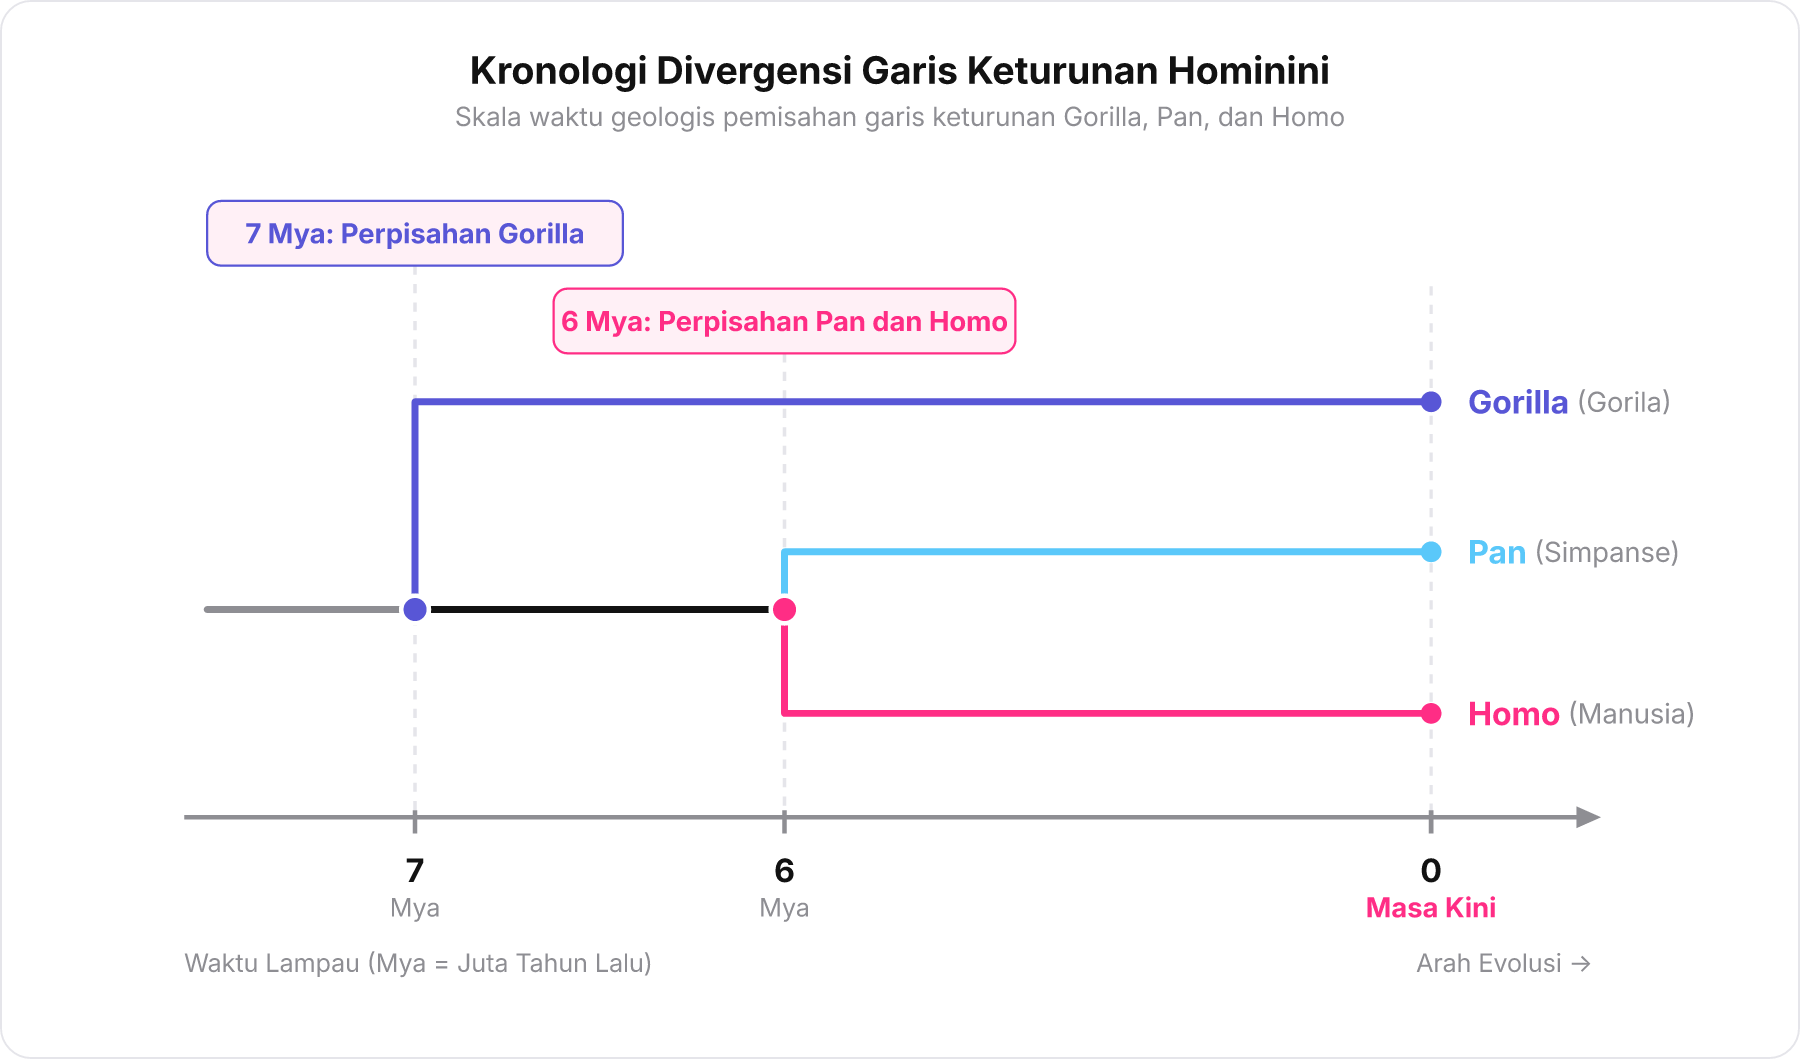
Ketika menelusuri percabangan kelompok manusia (Homo) dan simpanse (Pan), titik temu keduanya berada tepat pada angka 6 Mya. Sementara itu, leluhur bersama dari kelompok Homo dan Pan baru menyatu dengan garis keturunan gorila (Gorilla) pada percabangan yang lebih awal, yaitu pada angka 7 Mya. Karena angka 6 Mya lebih mendekati masa kini dibandingkan 7 Mya, titik MRCA antara Homo dan Pan berstatus paling mutakhir di antara kera besar Afrika. Data kronologi geologis ini menjadi landasan mengapa pernyataan bahwa manusia memiliki kekerabatan paling dekat dengan simpanse dan memiliki nenek moyang bersama yang lebih baru daripada dengan gorila (Opsi B) terbukti paling akurat secara ilmiah.
Pada suatu analisis waktu divergensi filogenetik, Kelompok X diketahui terpisah dari garis keturunan Kelompok Y pada estimasi 10 Mya. Sementara itu, Kelompok Z terpisah dari garis keturunan Kelompok Y pada estimasi 3 Mya. Evaluasi kebenaran dari masing-masing pernyataan berikut:
- Kelompok Y memiliki kekerabatan lebih erat dengan Kelompok Z dibandingkan dengan Kelompok X. — Benar
- Kelompok X bertindak sebagai nenek moyang langsung dari Kelompok Z karena waktu pemisahannya tercatat paling purba. — Salah
Pernyataan 1 Benar: Divergensi Z dan Y terjadi pada 3 Mya, jauh lebih baru daripada pemisahan Y dan X pada 10 Mya. Oleh karena itu, Y dan Z berbagi MRCA yang lebih mutakhir sehingga kekerabatannya lebih erat. Pernyataan 2 Salah: Kelompok X adalah garis keturunan takson masa kini yang menyimpang di masa lalu, bukan organisme leluhur pembentuk taksa Z. Organisme masa kini pada ujung cabang bukan leluhur bagi cabang lain di sebelahnya.
Spesies yang terpisah belakangan di skala waktu Mya adalah kerabat terdekat.
Kelompok Besar dan Leluhur Ordo
Kelompok taksonomi utama (klad besar) berasal dari leluhur eksklusif, dan tidak meliputi garis keturunan yang telah terpecah pada titik divergensi yang lebih awal (basal). Dalam sistematika filogenetik modern, pengelompokan yang valid harus bersifat monofiletik, yaitu mencakup satu nenek moyang bersama beserta seluruh organisme turunannya. Subordo Haplorhini (primata berhidung kering, meliputi tarsius, monyet, dan kera) merupakan salah satu klad monofiletik besar yang berpisah dari subordo Strepsirrhini (primata berhidung basah seperti lemur dan loris) pada masa awal evolusi primata sekitar 55 Mya.
Karena garis keturunan lemur (Lemur) bercabang pada garis basal Strepsirrhini, lemur tidak pernah menjadi bagian dari keturunan leluhur Haplorhini. Oleh karena itu, pernyataan bahwa seluruh primata Haplorhini berbagi nenek moyang bersama dengan lemur di dalam kelompok tersebut (Opsi C) keliru, karena lemur menempati klad saudara di luar Haplorhini. Hal yang sama menggugurkan anggapan bahwa subordo Haplorhini merupakan nenek moyang bagi lemur dan tarsius (Opsi E); subordo Catarrhini memang berakar di dalam Haplorhini, tetapi Haplorhini bukan leluhur dari kelompok lemur.
Di sisi lain, perbandingan waktu pemisahan antara Pongo dan Gorilla (~14 Mya) dengan Pan dan Homo (~6 Mya) pada Opsi D memang mencatat perbedaan angka kronologis. Namun, opsi tersebut gagal menjawab esensi hubungan kekerabatan primata yang ditanyakan soal, karena perpisahan Pan dan Homo merupakan peristiwa divergensi yang terjadi lebih mutakhir dan mendefinisikan kedekatan taksonomi tertinggi di antara kelompok hominoid tersebut.
Dalam rekonstruksi filogeni aves, kelas burung terbagi menjadi dua klad utama sejak masa basal: ordo Paleognathae (mencakup burung unta) dan ordo Neognathae. Garis keturunan Neognathae kemudian mengalami percabangan lanjutan dan menurunkan berbagai kelompok modern seperti bangsa elang dan bangau. Berdasarkan pola percabangan klad tersebut, manakah pernyataan yang akurat?
- Burung unta berevolusi dari leluhur eksklusif pembentuk kelompok Neognathae.
- Bangsa elang memiliki leluhur bersama eksklusif yang tidak diturunkan kepada burung unta.
Jawaban: Bangsa elang memiliki leluhur bersama eksklusif yang tidak diturunkan kepada burung unta.
Pernyataan 1 Salah: Paleognathae (burung unta) berpisah pada garis divergensi awal sebelum terbentuknya titik leluhur ordo Neognathae, sehingga burung unta bukan turunan dari leluhur eksklusif Neognathae. Pernyataan 2 Benar: Kelompok elang dan bangau berada di dalam klad monofiletik Neognathae dan berbagi nenek moyang bersama yang eksklusif, yang tidak diwariskan ke garis burung unta yang telah bercabang lebih dahulu.
Memahami pemisahan klad leluhur dalam subkelompok monofiletik.